 MineBio 精选
 BioLamina人类重组层粘连蛋白
 发布时间:2026/09/21
分化纯度总卡瓶颈?你可能忽略了这个底层变量
做iPSC定向分化的研发人员,应该都有过这样的瓶颈期:细胞因子浓度梯度摸了多轮,培养基换了几款,可目标细胞的纯度始终上不去,换一批细胞、换一批基质,结果还能差出一截。
多数人会把原因归结为细胞株状态、因子活性、操作手法,却很少往“基质”上深究——部分研究人员认为,基质只是让细胞贴壁的“涂层”,只要粘得住,就不会影响分化。但发育生物学的结论恰恰相反:细胞外基质是干细胞微环境的关键组成,是调控细胞命运决定、分化有序性与功能成熟的关键信号载体[3]。分化纯度上不去、批间波动大,很多时候问题的根源,或许就藏在你选的基质里。
一、别再只盯着细胞因子:基质是定向分化的“隐形指挥家”
要理解基质对分化的影响,得先回到体内发育的底层逻辑。
人体胚胎发育过程中,干细胞向不同谱系分化的同时,所处的基底膜组分也在动态变化:内细胞团阶段以LN521为主,神经发育阶段富集LN111,血管、胰岛发育过程中则以LN411、LN511为主[2]。不同亚型的层粘连蛋白,通过结合细胞表面不同的整合素受体,激活下游差异化的信号通路,与可溶性细胞因子协同,共同引导细胞向特定谱系有序分化[3]。
换句话说,细胞因子是分化的“指令信号”,而基质是分化的“环境基座”——没有匹配的基座,指令信号的传导就会失真,细胞无法针对启动有效分化程序,后续表现为分化效率低、纯度差、细胞异质性高。
一款基质能否支撑高质量分化,下面三点值得关注:
- 亚型匹配度:是否对应目标谱系发育过程中的天然基底膜组分;
- 信号完整性:能否提供完整的细胞-基质互作信号,诱导细胞建立正确极性;
- 组分纯净度:是否存在杂蛋白、内源性生长因子,干扰分化信号通路。
而市面上绝大多数常用基质,恰恰在这三点上存在先天缺陷,成为分化纯度提升的隐形阻碍。
二、为什么你的分化纯度上不去?三类常见基质的先天局限
1.Matrigel:杂因子干扰+亚型错配,分化结果像开盲盒
作为早期上市的成分未定义的经典基质产品代表,Matrigel被用于各类分化实验,但它也是分化不稳定、纯度难提升的主要诱因之一。
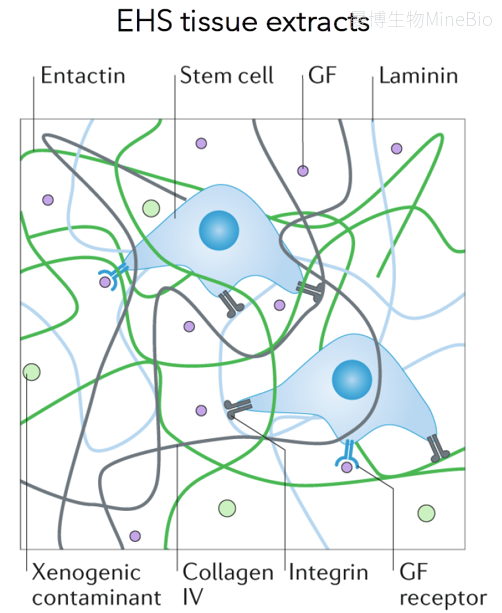
先是组分错配。Matrigel源于小鼠EHS肉瘤组织,核心层粘连蛋白亚型是LN111,属于胚外基底膜组分,既不是人源干细胞巢的天然成分,也与多数成体组织的基底膜组分不符[1]。用与发育生理不匹配的基质支撑分化,相当于在错误的土壤里播种,细胞接收不到正确的基质信号,分化路径天然就容易“走偏”。
更致命的是杂因子干扰。Matrigel中混杂着含量不定的TGF-β、BMP、EGF等内源性生长因子,这些因子会直接干扰分化诱导的信号通路:神经诱导时,混杂的TGF-β会拮抗神经分化信号;心肌分化时,未知生长因子会导致中胚层诱导不均一。潜在结果就是分化纯度低、杂细胞多,且不同批次的杂因子含量差异,易影响实验重复性[1]。
行业调研显示,40%的科研人员使用未限定的提取物类基质,而88%的研究者遭遇过自发分化、分化效率波动的问题,提取物的组分不确定性正是主要原因之一[1]。很多团队为了稳定结果,不得不一次性囤够全年用量的同一批次,占用大量资金与仓储,本质是在用成本掩盖基质的先天缺陷。
2.玻连蛋白/RGD基质:只有黏附,没有分化指令,纯度先天不足
很多团队为了实现无血清、成分限定,会选择玻连蛋白等RGD基序基质,但这类基质从生物学本质上就无法支撑高质量的定向分化。
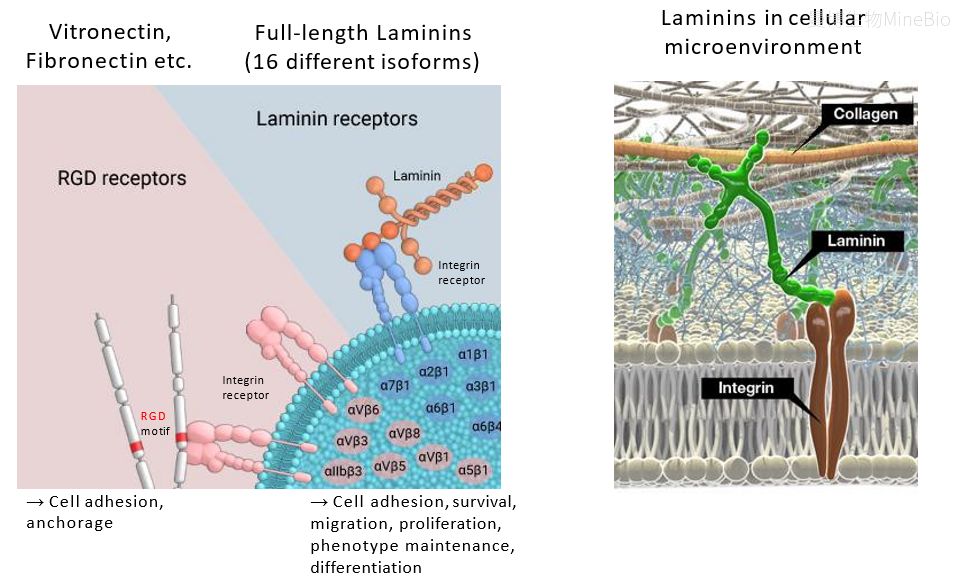
玻连蛋白仅通过RGD短肽结合细胞表面αvβ5整合素,传递较基础的“黏附存活”信号,不具备谱系定向调控能力[1]。打个比方:如果分化是一场定向越野,细胞因子是地图,那基质就是路况与路标;RGD基质只能保证细胞“站在地上”,既没有路标指引,也没有平整路径,细胞只能漫无目的地随机分化,纯度自然难以提升。
同时,RGD基质无法诱导细胞建立正确的顶-基极性,而细胞极性是启动有序分化、形成功能性组织的前提。缺少极性信号的约束,分化过程处于“无序生长”状态,细胞表型高度异质,即使勉强拿到标志物阳性的细胞,功能成熟度也严重不足,后续的功能实验、药物筛选结果参考价值有待考量。
3.层粘连蛋白E8片段:缺结构域,极性与成熟度挑战
相比玻连蛋白,E8片段靶向了层粘连蛋白的整合素结合区域,黏附性能与干性支撑更优,但在分化场景下需要考虑适配性。
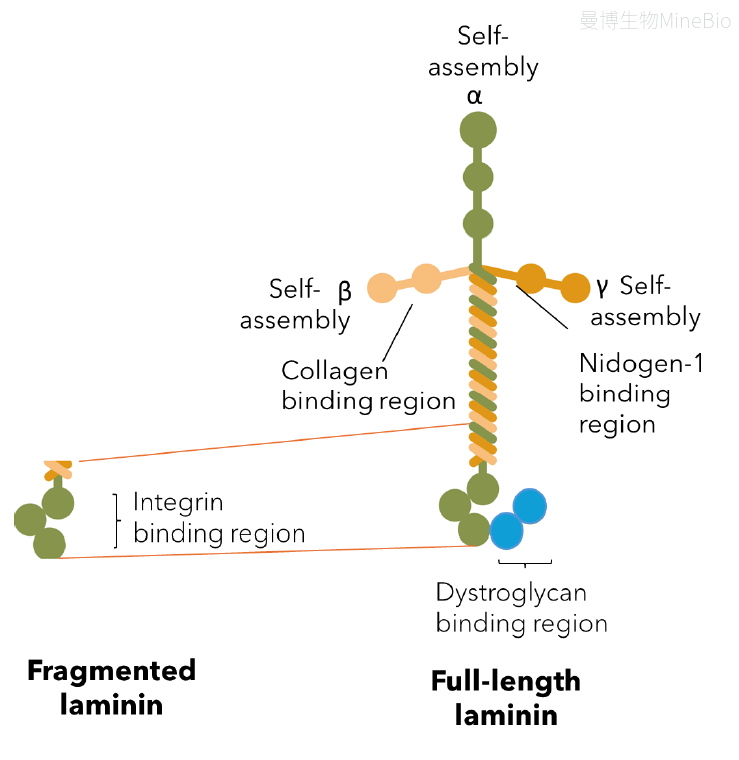
E8片段仅保留了层粘连蛋白C端负责整合素结合的区域,缺失了N端参与基底膜网络组装、调控细胞极性、结合生长因子的大量功能结构域[1]。它能让细胞“贴得更牢”,也能提供基础的干性信号,但无法介导完整的基底膜组装,无法诱导细胞建立正确的空间极性。
这就导致分化进入中后段时,瓶颈会集中爆发:神经分化中,神经上皮无法形成规整的神经管样结构,神经元成熟标志物表达不均;胰岛分化中,细胞无法建立分泌极性,胰岛素分泌功能与葡萄糖响应性差;心肌分化中,肌丝排列紊乱,搏动节律与成熟度远低于生理水平。看似分化标志物有表达,实则细胞结构与功能可能存在缺陷,纯度与成熟度想达到高质量实验与工艺的要求,还有优化空间。
三、全长层粘连蛋白:从根源提升分化效率与纯度的底层逻辑
明白了常规基质的短板,也就不难理解为什么全长重组层粘连蛋白(如Biolaminin系列)(点击查看),能成为高质量分化体系的参考标准——它从发育生物学根源上,匹配了分化过程的天然微环境需求,与细胞因子协同发挥作用,真正实现有效、均一、高成熟度的定向分化[3]。
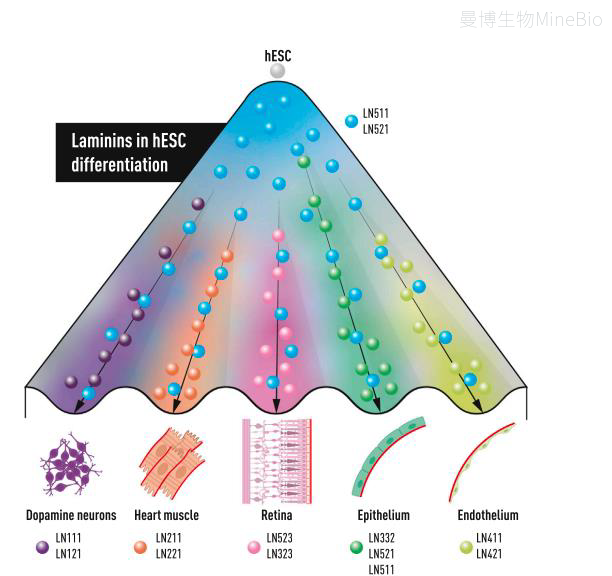
下图阐释了人胚胎干细胞(hESC)向下游不同组织细胞分化过程中,天然层粘连蛋白(Laminin)亚型的动态分布与功能定位,关键结论分为两部分:
1.不同Biolaminin亚型,匹配对应不同谱系分化需求
和单一基质“通吃所有分化”的逻辑不同,全长层粘连蛋白的主要优势之一,是可以通过亚型匹配,为不同谱系分化提供生理级的基质信号。
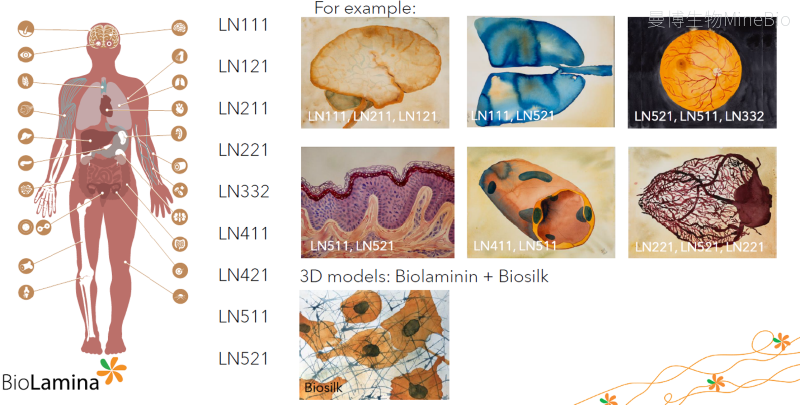
基于人体不同组织的天然基底膜组成,Biolaminin已覆盖了9种以上人源层粘连蛋白亚型,可实现分化流程生理相关性适配[2]:
- iPSC扩增维持阶段(点击查看):使用LN521,匹配胚胎干细胞巢天然组分,维持均一干性,为分化提供高质量起始细胞;
- 神经分化(点击查看):以LN521、LN111为核心亚型,搭配LN211、121等,匹配神经系统发育各阶段的基底膜组分,支持神经上皮诱导、多巴胺能神经元成熟以及3D脑神经类器官的等自组装与功能化[4];
- 内皮、胰岛分化(点击查看):使用LN521、LN511、LN411,匹配血管与内分泌组织的基底膜,提升分化细胞的功能成熟度[4];
- 上皮、皮肤分化(点击查看):使用LN332,复现表皮基底膜环境,支持上皮细胞极性建立与分层结构形成[4]。
从扩增到分化全程使用对应亚型的全长层粘连蛋白,相当于为细胞还原了体内发育的连续基质环境,让分化信号传导更具生理相关性,天然就具备更高的分化效率与纯度。
2.完整结构诱导细胞极性,启动有序分化程序
分化不是简单的标志物表达,而是一个从细胞命运决定到组织结构形成的有序过程,细胞极性的建立,是这一过程的关键开关。
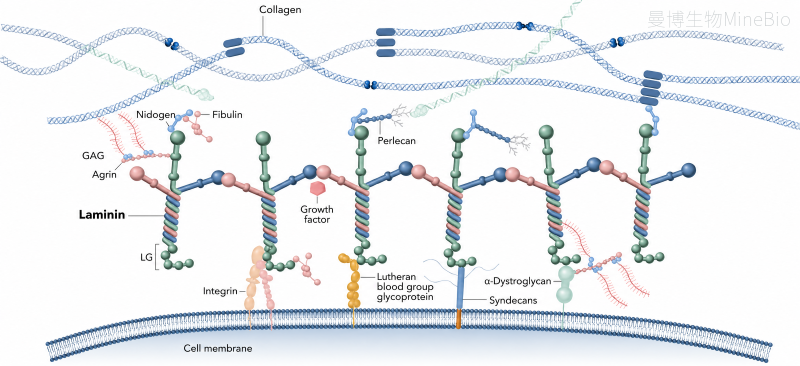
全长层粘连蛋白保留了天然三聚体的全部功能结构域,可通过N端结构域自主组装成连续的基底膜网络,与细胞表面的整合素、dystroglycan等受体结合,准确诱导细胞建立顶-基极性[3]。在均一的极性信号引导下,细胞群体同步启动分化程序,分化路径高度一致,杂细胞比例大幅降低,最终获得的细胞群体均一性、纯度明显提升。
这也是很多团队的真实体验:同样的细胞因子方案,从其他基质换到全长层粘连蛋白后,目标细胞纯度能提升15%-30%,且细胞形态更规整、结构更有序,不需要额外的分选步骤就能满足后续实验需求。
3.成分完全限定,消除杂因子干扰,批间高度稳定
分化实验怕的就是“变量不可控”,而全长重组层粘连蛋白从根源上消除了基质带来的未知变量。
重组表达体系生产的全长层粘连蛋白,化学成分完全限定,无动物源组分、无未知杂蛋白、无内源性生长因子,不会干扰分化诱导的信号通路[3]。每批次产品都经过纯度、三聚体完整性、生物活性、内毒素等多维度严格质控,批间一致性高。
对于工艺开发与高通量筛选而言,稳定的基质意味着分化结果可重复、工艺参数可平移,不用再为“换批次就翻车”反复优化条件,大幅减少无效实验的人力与耗材消耗。
4.不止提升纯度,更能驱动功能成熟
高质量分化的最终目标,不是“标志物阳性”,而是获得功能接近体内原代的细胞。
全长层粘连蛋白提供的类生理微环境,不仅能提升分化纯度,更能驱动分化细胞的功能成熟:神经元能形成更复杂的突触连接,具备更稳定的电生理功能;胰岛β细胞葡萄糖刺激的胰岛素分泌响应更明显;心肌细胞肌节结构更规整,搏动节律更稳定[2]。最终构建的疾病模型、药物筛选体系,生理相关性更强,实验结果的参考价值与转化意义也更高。
四、分化场景基质选型指南
基质选型没有非黑即白的好与坏,主要是为匹配项目的阶段与需求。结合不同基质的特性,可参考以下几点进行选型:
- 入门预实验、初步摸索分化方案:可暂时使用Matrigel完成前期探索,但需注意批次筛选,且不建议基于此得出严谨的分化效率结论;
- 仅需验证分化标志物、无功能与纯度高要求:可选择玻连蛋白或E8片段作为低成本方案,但需提前评估细胞异质性与功能缺陷对实验的影响;
- 高质量疾病模型构建、药物筛选、功能机制研究:优先选择对应亚型的全长层粘连蛋白,提升分化纯度与细胞功能成熟度,保证实验结果的可靠性与可重复性[3];
- 工艺开发、细胞治疗管线、IND申报项目:建议选择全长层粘连蛋白,不仅能保障分化工艺的稳定性与可放大性,更有完整的产品等级体系(科研级LN、转化级MX、细胞治疗级CTG)支撑从科研到临床的无缝转化,前期工艺数据可直接复用,大幅缩短研发周期[3]。
写在最后
很多团队在优化分化方案时,愿意花几万块买进口细胞因子,愿意花几个月摸诱导时序,却在基质选型上凑合用。但事实上,基质是分化体系的地基,地基不牢,上面的因子、时序、培养基优化得再精细,也难以突破纯度与功能的天花板。
从“靠提取物碰运气”到“用生理级基质确切调控”,差的不只是一款试剂的价格,更是整个分化体系的质量上限。当你再为分化纯度低、结果不稳定而困扰时,不妨从基质这个底层变量入手,或许就能突破卡了很久的瓶颈。
| 产品 | 货号 | 规格 | 用途及特点 |
|---|---|---|---|
| Biolaminin 521 CTG (Clinical) | CT521-0501 | 500 μg | 适合人PSC、MSC和大多数贴壁依赖性祖细胞类型的无饲养层培养 |
| Biolaminin 521 MX (Pre-clinical) | MX521-0501 | 500 μg | 适合从LN521过渡到CT521,促进人ESC和iPSC的自我更新 |
| Biolaminin 521 LN(RUO Hot🔥) | LN521-02/05 | 100 μg/500ug | 适合PSC的单细胞传代而无需任何凋亡抑制剂,促进人ESC和iPSC的自我更新 |
| Biolaminin 511 LN | LN511-0202/0502 | 100 μg /500ug | 适合小鼠胚胎和诱导多能干细胞iPSC的细胞培养,维持细胞多能性 |
| Biolaminin 421 LN | LN421-02/0501 | 100 μg /500ug | 适合内皮细胞、系膜细胞的培养和神经肌肉接头的成熟 |
| Biolaminin 411 LN | LN411-02/0501 | 100 μg /500ug | 适合胰岛细胞、内皮细胞、脂肪细胞和表皮细胞的培养(血管、免疫、神经和造血系统) |
| Biolaminin 332 LN | LN332-0202/0502 | 100 μg /500ug | 适合角质形成细胞、RPE细胞和毛囊干细胞的培养,高度影响角质形成细胞增殖 |
| Biolaminin 221 LN | LN221-02/0501 | 100 μg /500ug | 适合多种组织特异性细胞的生长、存活和分化,包括心肌细胞和骨骼肌细胞 |
| Biolaminin 211 LN | LN211-02/0501 | 100 μg /500ug | 适合多种组织特异性细胞的生长、存活和分化,包括运动神经元、心肌和骨骼肌细胞 |
| Biolaminin 121 LN | LN121-02/0501 | 100 μg /500ug | 一般细胞培养基质,是体外大多数细胞类型的通用附着蛋白 |
| Biolaminin 111 LN | LN111-02/0501 | 100 μg /500ug | 一般细胞培养基质,已成功用于肝脏和神经分化 |
图7.曼博生物供应BioLamina多系列全长laminin亚型产品货号及规格
References
[1] BioLamina AB. Stem Cell Culture Matrices: A Practical Guide [Technical Handbook]. Sundbyberg, Sweden: BioLamina AB; 2019.
[2] BioLamina AB. Tissue-specific Cell Culture Matrices [Infographic]. Sundbyberg, Sweden: BioLamina AB; 2024.
[3] BioLamina AB. Official Website. Sundbyberg, Sweden: BioLamina AB; 2026. Available from:
[4] BioLamina AB. Tissue-specific Cell Culture Matrices [Infographic]. Sundbyberg, Sweden: BioLamina AB; 2024.
本文基于公开技术资料与学术文献整理,仅用于科研信息分享,不构成产品性能承诺或实验方案推荐,具体实验参数与应用效果请结合实际研究体系验证。上海曼博生物可提供Biolamina全长人重组层粘连蛋白全系列产品(点击查看),覆盖LN521、LN111、LN511等多种亚型,适配iPSC扩增、多谱系定向分化、类器官构建等多种科研场景,可为相关研究提供产品咨询与技术支持。